Ras 신호전달 경로 | ELISA
1
Ras 란 무엇인가?
Ras 는 쥐 사종 (sarcoma) 의 약자로서, 낮은 고유 GTPase 활성을 지닌 작은 단량성 GTP 결합 단백질입니다. 이 단백질은 세포의 세포질막 내면에서 주로 고정되어 있으며 GDP 분자와 결합할 때는 기능적으로 휴지 상태에 있습니다.
2
Ras 신호전달 경로 란 무엇인가?
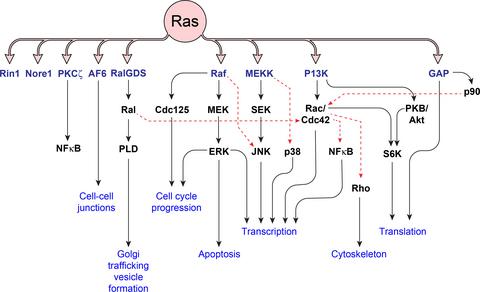
Ras 신호 전달 연쇄반응 내에서 Ras 가 활성화되면 하류 기질 분자들을 대상으로 인산화 연쇄반응을 개시하여 세포의 핵심 생물학적 활동을 지배하는 다양한 2 차성 신호전달 축들을 조율합니다.
3
Ras 신호전달 경로의 핵심 생물학적 역할
Ras 신호 전달 연쇄반응은 세포 성장과 생존, 세포 운명 분화, 프로그램된 세포 사멸 (세포자살), 세포골격 역학뿐만 아니라 세포 내 단백질 이동 및 분비 활동 등 수많은 기본적 세포 사건들을 조절하는 데 관여합니다.
4
Ras 경로의 활성화와 신호전달 연쇄반응
휴식 상태의 생리학적 조건에서 Ras 는 GDP 와 복합체를 형성하여 생물학적으로 비활성 상태를 유지합니다. Ras 가 GDP 에서 해리되고 GTP 과 결합할 때 활성화된 활성형으로 전환됩니다. 구아닌 뉴클레오타이드 교환 인자 (GEFs, 대표적으로 Sos) 는 상류 트리거로서 Ras 의 활성화를 유도합니다. 반대로, GTPase‑활성화 단백질 (GAPs) 은 Ras 에 결합된 GTP 의 분해를 촉진하여 활성화된 Ras-GTP 를 잠복 상태인 Ras-GDP 로 전환시키고 Ras 매개 신호전달을 종료합니다.
GEF 들은 GDP‑결합된 Ras 에서 GDP 의 해리를 용이하게 합니다. Sos 는 SH2 구조영역을 갖지 않으므로 세포막 수용체와 직접 상호작용할 수 없습니다. 대신, 그 브리지 adaptor 단백질인 Grb2 는 자신의 SH2 도메인을 통해 인산화된 티로신 잔기에 부착한 후 자신의 SH3 모티프를 통해 Sos 를 모집합니다. 모집된 Sos 가 subsequently 막에 고정된 Ras 와 상호작용하여 Ras 의 활성화를 유발합니다. 대안적으로, EGF, PDGF 및 FGF 같은 성장인자들은 수용체 단백질 티로신 키나제 (RPTKs) 에 결합하고 이를 활성화시켜 상류 신호전달을 개시하며 이는 다시 Ras 의 활성화로 이어집니다.
활성화된 Ras 는 물리적으로 Raf 와 상호작용하여 Raf 의 키나제 활성을 자극합니다. 활성화된 Raf 단백질은 MEK1/2 을 추가로 인산화하여 활성화시킵니다. MEK1/2 은 ERK1/2 의 인산화를 매개하여 이들 효과기 키나제를 켭니다. 인산화된 ERK1/2 은 세포핵으로 이동하여 Elk‑1 과 eIF4E 등의 여러 하류 표적 유전자들의 전사를 상향 조절함으로써 궁극적으로 세포 증식과 분화 과정을 주도합니다.
또한, 활성화된 Ras 는 직접 PI3K 에 결합하여 이를 자극할 수 있습니다. 촉매 활성형인 PI3K 은 막 지질 PIP2 를 2 차 전달체인 PIP3 로 전환합니다. 축적된 PIP3 는 PDK 를 모집하고 활성화하며 이는 차례로 Akt 를 인산화하여 활성화시킵니다. 이로써 세포 증식 능력을 조절하는 PI3K-Akt 신호전달 분지를 개시합니다.
RalGDS 는 Ras 와 상동인 작은 GTPase 인 RalA 와 RalB 에서 GDP 의 방출을 촉진하여 이 두 단백질이 GTP 에 결합하고 활성화될 수 있게 합니다. RalBP 은 GTP‑결합된 Rac 과 Cdc42 의 활성을 억제하여 액틴 세포골격의 재배열을 조절합니다. 추가적으로, Rac 과 Cdc42 를 통한 신호전달은 전사 인자 NF-κβ 를 활성화하여 항세포 사멸 단백질들의 발현을 높여 세포 사멸 신호에 대항합니다.
GEF 들은 GDP‑결합된 Ras 에서 GDP 의 해리를 용이하게 합니다. Sos 는 SH2 구조영역을 갖지 않으므로 세포막 수용체와 직접 상호작용할 수 없습니다. 대신, 그 브리지 adaptor 단백질인 Grb2 는 자신의 SH2 도메인을 통해 인산화된 티로신 잔기에 부착한 후 자신의 SH3 모티프를 통해 Sos 를 모집합니다. 모집된 Sos 가 subsequently 막에 고정된 Ras 와 상호작용하여 Ras 의 활성화를 유발합니다. 대안적으로, EGF, PDGF 및 FGF 같은 성장인자들은 수용체 단백질 티로신 키나제 (RPTKs) 에 결합하고 이를 활성화시켜 상류 신호전달을 개시하며 이는 다시 Ras 의 활성화로 이어집니다.
활성화된 Ras 는 물리적으로 Raf 와 상호작용하여 Raf 의 키나제 활성을 자극합니다. 활성화된 Raf 단백질은 MEK1/2 을 추가로 인산화하여 활성화시킵니다. MEK1/2 은 ERK1/2 의 인산화를 매개하여 이들 효과기 키나제를 켭니다. 인산화된 ERK1/2 은 세포핵으로 이동하여 Elk‑1 과 eIF4E 등의 여러 하류 표적 유전자들의 전사를 상향 조절함으로써 궁극적으로 세포 증식과 분화 과정을 주도합니다.
또한, 활성화된 Ras 는 직접 PI3K 에 결합하여 이를 자극할 수 있습니다. 촉매 활성형인 PI3K 은 막 지질 PIP2 를 2 차 전달체인 PIP3 로 전환합니다. 축적된 PIP3 는 PDK 를 모집하고 활성화하며 이는 차례로 Akt 를 인산화하여 활성화시킵니다. 이로써 세포 증식 능력을 조절하는 PI3K-Akt 신호전달 분지를 개시합니다.
RalGDS 는 Ras 와 상동인 작은 GTPase 인 RalA 와 RalB 에서 GDP 의 방출을 촉진하여 이 두 단백질이 GTP 에 결합하고 활성화될 수 있게 합니다. RalBP 은 GTP‑결합된 Rac 과 Cdc42 의 활성을 억제하여 액틴 세포골격의 재배열을 조절합니다. 추가적으로, Rac 과 Cdc42 를 통한 신호전달은 전사 인자 NF-κβ 를 활성화하여 항세포 사멸 단백질들의 발현을 높여 세포 사멸 신호에 대항합니다.
5
인간 질환에서의 비정상적 Ras 신호전달
종양 유전자 (Oncogene) 의 돌연변이는 다양한 악성 종양에서 널리 발견되는데, 가장 빈번한 변화는 글리신 잔기 12 와 13 또는 글루타민 잔기 61 에서의 아미노산 치환입니다. 돌연변이 Ras 단백질은 GAP 분자의 존재 하에서도 심하게 손상된 GTP 가수분해 능력을 보입니다. GAP‑보조 촉매작용 없이 GTP 분해는 Ras 의 약한 고유 GTPase 활성에 전적으로 의존하여 Ras-GTP 복합체의 수명을 극단적으로 연장시킵니다. 지속적 Ras 활성화는 Ras-Raf-MEK-ERK 신호전달 축의 구성적 과활성화를 유발하며, 이는 통제되지 않는 세포 분열을 촉진하고 종양 형성 및 진행을 용이하게 합니다.
핵심 노트: Ras-GTP = 활성화 상태; Ras-GDP = 비활성 상태